Mostrando entradas con la etiqueta sistemas complejos. Mostrar todas las entradas

jueves, 13 de marzo de 2008

Dinamica no lineal en Tribolium

Diego Griffon B.


El grupo de dinámica no lineal de Tribolium, esta conformado por un conjunto interdisciplinario de investigadores, con un elegante acercamiento a la unión entre teoría y experimentación. Sus trabajos se fundamentan en el uso de un modelo tipo Ricker (May y Oster, 1976), ajustado para que represente la dinámica poblacional de especies del genero Tribolium.
.
A partir de este modelo, los autores hacen una serie de predicciones sobre la dinámica del insecto bajo ciertos valores de los parámetros del modelo, luego estos resultados son contrastados con el comportamiento de poblaciones experimentales en condiciones de laboratorio que reproducen los valores de los parámetros previamente considerados.

En estos trabajos, en un conjunto sorprendente de resultados, se muestra el alto grado de ajuste encontrado entre las predicciones del modelo y los resultados experimentales, lo que representa una elocuente validación de su poder predictivo.

Para la construcción de este modelo, los autores siguen una serie de criterios, que ya de por si son una rica enseñanza (3, 4):

I. Los modelos no se deben diseñar ad hoc, por el contrario se deben basar en mecanismos específicos, considerados importantes biológicamente. Restringiendo en la medida de lo posible los parámetros y las variables consideradas, para que de esta manera el modelo pueda ser validado estadísticamente.

II. El modelo debe considerar la estocasticidad inherente a todo proceso biológico, por lo que una versión estocástica del modelo determinista debe ser siempre construida. La manera en la cual se incluya aleatoriedad al modelo, debe estar fundamentada en consideraciones biológicas. Esta versión del modelo tiene la ventaja de poder ser puesta a prueba como hipótesis nula para la de explicación de datos reales, convirtiéndose de esta manera en una conexión entre el modelo y los datos.

III. La estimación de los parámetros del modelo (parametrizacion) y la validación de este, deben ser procedimientos distintos. De esta manera se evitan tautologías que validen el modelo artificialmente.

IV. Un buen modelo es tanto predictivo como descriptivo. De hecho, la mejor evidencia en favor de la potencia de un modelo, se obtiene cuando sus predicciones concuerdan con los resultados de experimentos controlados y rigurosamente analizados estadísticamente.

Sin lugar a dudas, los hallazgos fundamentales de este grupo de investigación, en boca de los propios autores son (4):

“Our studies comparing model predicted dynamics with data, whether they deal with exotic dynamics such as chaos or other seemingly less important dynamic patterns, serve at least two important purposes. First, they add to the catalog of nonlinear phenomena rigorously documented to occur in a biological population, and by doing so they demonstrate the importance of nonlinear dynamics in ecology. Second, as they accumulate, these studies provide stronger and stronger support for the validity of the LPA model and therefore to biological conclusions based on that model.”

O en palabras de Robert May (1999):

“
In a series of beautiful experiments, Constantino et al. (1995) have shown how essentially by changing development rates, laboratory populations of Tribolium in constant environments can move, in a way that is predictable, from steady cycles to chaotic fluctuations”

En términos generales, los aportes fundamentales de estos trabajos son:

Demuestra la posibilidad de ocurrencia de dinámicas complejas (i.e., ciclos cuasiperiódicos y caos) en poblaciones reales.

Llevan a cabo de manera exitosa la unión entre teoría y práctica.

Desarrollan un modelo con alto poder predictivo (cuantitativo).

Presentan una metodología extrapólable para la elaboración y validación de modelos ecológicos.

Suman evidencias a la presencia de rutas al caos a través de bifurcaciones en ecuaciones simples y demuestran que estas rutas también se cumplen en poblaciones reales.

Demuestran que malos manejos de poblaciones naturales (e.g., plagas, peces de interés económico) que alteren sus mortalidades, pueden generar dinámicas complejas, que entre otras cosas produzcan aumentos o disminuciones abruptas en las densidades poblacionales.

En el último de estos aportes existe una enseñanza para el manejo de recursos naturales, como bien lo expresan los autores:

“For applied ecology, the experiment suggests adopting a cautious approach to the management or control of natural populations, based on sound scientific understanding. In a poorly understood dynamical population system, human intervention— such as changing a death rate or a recruitment rate—could lead to unexpected and undesired results.”
Costantino et al., 1997

A continuación se describen en detalle el modelo y algunos de los resultados fundaméntales obtenidos por este grupo de investigación.

El modelo

El modelo estudiado por este grupo de investigación, se fundamenta en las interacciones entre los estadios larva, pupa y adulto de Tribolium castaneum, por lo cual se conoce al modelo como LPA. La interacción entre estos estadios que simula en modelo es el canibalismo. La cual, de acuerdo a los resultados de estos trabajos, es determinante en la dinámica poblacional de la especie (4).

En T. castaneum los estadios móviles (larvas y adultos) canibalizan a los inmóviles (huevos y pupas) (1, 2, 3, 4). El hecho de que la ontogenia del animal este conformada por estadios conspicuos, es la razón por la cual se utiliza un modelo estructurado por etapas (4).

Este modelo pertenece a la familia de modelos tipo Ricker (4), en este caso estructurado por etapas y con solapamiento de generaciones en una de ellas (i.e., adulto). Si denotamos por Lt , Pt , At el numero de larvas, pupas y adultos en un tiempo t, el objetivo del modelo es aplicar alguna función a las cantidades anteriores para obtener los valores Lt+1 , Pt+1 , At+1. En este modelo se asume que un intervalo de tiempo t es igual a dos semanas, tiempo de duración tanto de la fase pupal y como de la fase larval (4, 5).

El en caso de las larvas, la función que permite relacionar t+1 con t es (5):
Donde b representa el número de larvas que se originan a partir de cada adulto, obsérvese que este parámetro representa implícitamente el número de huevos puestos por los adultos en conjunto con la probabilidad de sobrevivir hasta la eclosión (5). En el modelo se asume que los encuentros entre los diferentes instares son aleatorios, es decir siguen una distribución Poisson (4). Por lo tanto aparecen en la expresión como exponentes, donde -cea representa la probabilidad de que un huevo escape del canibalismo por un adulto y -cel representa la probabilidad de que un huevo escape del canibalismo por una larva (4). De esta manera, al multiplicar estos términos por las cantidades de individuos presentes en las clases apropiadas en un tiempo t, obtenemos el número de individuos en un tiempo t+1 (i.e., Lt+1) (4).

El en caso de las Pupas, la función que permite relacionar t+1 con t es (es importante recalcar que las larvas no sufren canibalismo) (4, 5):

Donde μl representa la probabilidad de que una larva muera en un intervalo de tiempo t (4, 5).

Finalmente, para los adultos la expresión que permite relacionar t+1 con t es (4, 5):

Donde –cpa representa la probabilidad de que una pupa escape del canibalismo por un adulto (asumiendo encuentros aleatorios) (4) y μa representa la probabilidad de que un adulto muera en un intervalo de tiempo t.

En esta expresión podemos apreciar que el modelo contempla (a diferencia de los modelos tipo Ricker convencionales) solapamiento de generaciones. Los adultos presentes en un instante de tiempo t+1, están compuestos por aquellos que sobrevivieron en el instante de tiempo t (i.e., (1- μa) At), mas los que se incorporan partir del estadio anterior (i.e., Pt exp -cpaAt) (4, 5).

En definitiva el modelo comprende el siguiente sistema de ecuaciones (1, 2, 3, 4, 5):

Es de destacar que este sistema recursivo tiene forma de matriz de Leslie no lineal (4).

Tomando en cuenta el criterio II propuesto por los autores para la construcción de modelos, se incorpora aleatoriedad al modelo introduciendo ruido al esqueleto determinístico ya descrito. Desde un punto de vista ecológico se consideran dos tipos de estocasticidades, i.e., demografía y ambiental.

El modelo se incorpora la estocasticidad ambiental de la siguiente manera:


Donde Et = (E1, E2 y E3) es un vector de ruido, constituido por variables aleatorias de distribución normal con media cero y matriz de covarianza igual a ∑ = (σij), los valores de estas variables no están correlacionadas en el tiempo.

Para el caso de estocastisidad demográfica se utiliza una trasformación de raíz cuadrada de la siguiente forma:

Dadas las altas densidades poblacionales que se pueden llegar a obtener en esta especie, se prefiere el modelo que contempla estocasticidad ambiental, ya que este proceso se cree más importante que la estocastisidad demográfica a densidades altas (5).

Es interesante mencionar que en todos los casos cuanto ∑ =0 el modelo estocastico se hace igual al determinístico (3, 4, 5).


La dinámica

Los modelos tipo Ricker (i.e., con exponentes) se caracterizan por presentar un conjunto muy diverso de comportamientos, dependiendo de los valores de sus parámetros (May & Oster, 1976). Estudiando el cubo positivo (volumen con sentido biológico) del espacio de fases compuesto por las variables L, P, A, se puede analizar los resultados del modelo para diferentes valores de los parámetros (aquí se hace ∑ = 0).

Un resultado interesante desde un punto de vista topológico, es la existencia dentro de este cubo, de un subcubo (caja), delimitado por: 0 ≤ L ≤l*,0 ≤ P ≤ P*,0 ≤ A ≤ A*, en el cual permanecen todas las orbitas que se originen en R+3 (4). Esto implica la existencia de un atractor global conectado en el subcubo (4).

Para b < μa/(1-μl) el atractor global es el punto (L, P, A) = (0, 0, 0), es decir que cualquier trayectoria que se origine en el cubo positivo del espacio de fases, tenderá a ese punto a medida que el tiempo tienda a infinito, lo que significa que la población se extingue (4).

Para b > μa/(1-μl) el origen es inestable y la dinámica es persistente con respecto a este, es decir, para cualquier valor no negativo de las condiciones iniciales, la población nunca llega a extinguirse (4).

Para b > μa/(1-μl) existe un equilibrio positivo único. Este equilibrio es de forma local asintoticamente estable, para valores de b cercanos a μa/(1-μl). Para otros valores de los parámetros, el equilibrio puede ser inestable, y bifurcaciones a dinámicas de periodo dos o caóticas pueden ocurrir.

A modo de ejemplo, en la Figura1 se presenta el diagrama de bifurcación obtenido al variar los valores de la mortalidad de adultos (μa), mientras se dejan constantes los otros parámetros del modelo (b = 7,483; μl = 0,2670; cae = 0.009170; cel=0,01200; cpa=0,004139).

Figura 1. Diagrama de bifurcación del modelo LPA determinístico para diferentes valores del parámetro μa (b = 7,483; μl = 0,2670; cae = 0.009170; cel=0,01200; cpa=0,004139).

En esta figura se aprecia como para diferentes valores del parámetro μa, se puede obtener diferentes valores de equilibrio, ciclos limites de periodo 2 y bucles invariantes (ciclos cuasiperiódicos). Inclusive para μa ≈ 0,6 se observa una bifurcación reversa.

Los experimentos

El conjunto fundamental de experimentos realizados por el grupo de investigación, consisten en el mantenimiento de poblaciones de dos líneas genéticas (SS y RR) de T. castaneum durante considerables periodos tiempo, y variar b o cpa haciendo ceteris paribus. Por lo tanto, los experimentos están relacionas con el efecto de manipular el numero de individuos en la fase de adultos. Esto se logra variando el número de adultos (agregando o quitando) a la hora de realizar los censos poblacionales (cada dos semanas).

En todos los casos, la mitad de los experimentos se utilizan para parametrizar las ecuaciones del modelo, mediante estimaciones máxima verosimilitud y la otra mitad se utilizan para evaluar el poder predictivo del modelo parametrizado.

Es en esta parte del trabajo, donde los resultados más espectaculares aparecen. Por ejemplo, si se comparan los resultados obtenidos numéricamente para la dinámica asintótica variando μa, con sus contrapartes experimentales, se obtiene un asombroso ajuste (Figura 2).

Figura 2. Resultados del modelo determinístico (∑ =0) y correspondientes experimentos. Círculos negros modelo determinístico, círculos blancos experimentos.

Nótese que estos resultados concuerdan con la ocurrencia de una bifurcación reversa (Figura 2, diagramas de fases inferior derecho e inferior izquierdo) como ya había sido comentado en la discusión de diagrama de bifurcación de este experimento (Ver figura 1, μa ≈ 0,6).

Otro conjunto de experimentos, se realizaron variando la probabilidad de canibalismo adulto-pupa (cpa), obteniéndose resultados igualmente asombrosos (Figura 3) (3, 4). En este caso, los resultados son particularmente llamativos, por que involucran una ruta compleja al caos mediante bifurcaciones, similar a la señalada por Robert May (May & Oster, 1976) en la ecuación logística. Demostrando de esta manera, que este comportamiento es posible en poblaciones naturales.


Figura 3. Caos en el modelo LPA. a.- Diagrama de bifurcación de la ruta ala caos para diferentes valores del parámetro cpa (b = 7,483; μl = 0,2670; μa = 0,96 cae = 0.009170; cel=0,01200; =0,004139). b.- Atractor extraño para cpa.= 0,35 en el modelo determinístico. c.- Resultados (7500) del modelo estocástico para iguales condiciones a las utilizadas en “a”. d.- Resultados de los experimentos con poblaciones reales de Tribolium para iguales condiciones a las utilizadas en “a” y “b”.


Bibliografía:

(1) Costantino, R. F., Cushing, J. M., Dennis, B. y Desharnais, R. A.. 1995. Experimentally induced transitions in the dynamics behaviour of insect populations, Nature. 375, 227-230.
(2) Costantino, R. F., Desharnais, R. A., Cushing, J. M. y Dennis, B. 1997. Chaotic dynamics in an insect population. Science. 275, 389-391.
(3) Cushing, J. M., Costantino, R. F., Dennis, B.,. Desharnais, R. A. y Henson, S. M. 1998. Nonlinear Population Dynamics: Models, Experiments, and Data, Journal of Theoretical Biology. 194, No. 1, 1-9.
(4) Cushing, J.M., Henson, S.M., Desharnais, R.A., Dennis, B., Costantino, R.F., y King, A. 2001. A chaotic attractor in ecology: theory and experimental data. Chaos, Solitons, and Fractals. 12: 219–234.
(5) Dennis, B., Desharnais, R. A., Cushing, J. M. y Costantino, R. F.. 1995. Nonlinear demographic dynamics: mathematical models, statistical methods, and biological experiments. Ecological Monographs. 65, 261-281.

May, R.M. & Oster, G.F. (1976) Bifurcations and dynamic complexity in simple ecological models. The American Naturalist, 110, 573-599

May, R. 1999. Unanswered questions in ecology. Philosophical Transactions of the Royal Society of London B 354:1951-1959

sábado, 23 de febrero de 2008

Los sistemas biológicos como redes

.
Maria Daniela Torres-Alruiz

Diego Rojas

Diego Griffon

¿Qué tienen en común una colonia de abejas, un ecosistema tropical, el funcionamiento del cerebro, la red de colaboraciones científicas o la internet?, que todos pueden ser vistos como sistemas complejos. Un sistema complejo es una red de elementos interconectados que exhiben propiedades colectivas no caracterizables a través del conocimiento parcial de las partes. Por ejemplo, propiedades del cerebro como la memoria no pueden ser reducidas al comportamiento de una sola neurona (Solé & Goodwin, 2000; Solé & Bascompte, 2006). Los enfoques reduccionistas predominantes en la investigación científica de todo el siglo XX, mostraron resultados importantes y necesarios para la comprensión mecanística y fenomenológica de los sistemas biológicos. Pero en la actualidad se reconoce que para entender la estructura y dinámica de cualquier sistema biológico, es indispensable considerar las redes de interacciones entre las partes, ya que éstas generan la estructura y permiten el funcionamiento del sistema. Un campo de investigación que permite el estudio de tales redes es la Teoría de Sistemas Complejos (Capra, 1996; Solé & Goodwin, 2001; Barabási & Oltvai, 2004; Proulx et al., 2005, Trewavas, 2006).

Uno de los avances más interesantes en esta área ha sido el reconocimiento de patrones de organización similares en redes de diferente naturaleza. Por ejemplo, se ha encontrado que distintas redes metabólicas de organismos procariotas y eucariotas, redes de tramas tróficas, sociales o la World Wide Web presentan propiedades mundo pequeño, lo cual permite que pequeñas perturbaciones alcancen toda la red en muy poco tiempo (Jeong et al., 2000; Montoya & Solé, 2002; Solé et al., 2003; Barabási & Oltvai, 2004). Hallazgos como estos han permitido pensar que es posible que existan mecanismos similares en la formación de redes disimiles, y que podrían existir patrones universales de organización. Pero, no en todos los sistemas se pueden formular leyes universales, debido a sus diferencias intrínsecas. Por ejemplo, aún cuando las entidades biológicas son sistemas fisico-químicos que están sujetos a procesos termodinámicos y dinámicos, poseen la particularidad de la reproducción con herencia, y por tanto de evolucionar. Este aspecto implica que al considerar sistemas biológicos en ciertas escalas y para algunas preguntas, la descripción global sola es insuficiente. Tal como plantean Maynard Smith & Szathmáry (1999), el que una colonia de hormigas sea muy eficiente explotando un ambiente, no explica aspectos como el origen de las castas sociales. Este aspecto evidencia la necesidad de profundizar en el conocimiento de la relación partes-todo (upward y downward causation, Trewavas, 2006) con aspectos como el mérito adaptativo (fitness), para establecer entre otros, el origen de los patrones de relación (Proulx, 2005; Maynard Smith & Szathmáry, 1999), pero esto no desvirtúa el hecho de que un sistema biológico pueda ser visto como un sistema complejo.

Entonces, ¿cuáles preguntas pueden ser fundamentales para comprender un sistema biológico?. Podría decirse que tales interrogantes se relacionan con dos aspectos básicos, la descripción y el origen de los sistemas. Por ejemplo, ¿cuántos elementos constituyen el sistema?, ¿qué características tienen estos elementos?, ¿cómo se relacionan entre sí?, ¿cómo surgió ese patrón de interacción particular?, ¿cómo interactúa el sistema con el medio exterior?, ¿cómo se mantiene en el tiempo el patrón de interacciones? y ¿cómo emerge un nuevo nivel de integración biológica?. En esta sección se pretende mostrar que el análisis de redes en biología permite responder las preguntas anteriores prácticamente en cualquier escala y nivel de organización (Loehle 2004; Pascual, 2005; Reuter et al., 2005), siempre y cuando se conciba al biosistema como un sistema complejo o una red y se consideren con precisión aspectos fundamentales a la naturaleza de lo biológico como es la cualidad de la reproducción con herencia.

Los sistemas complejos presentan entre otras, dos características muy conocidas en biología, jerarquías y propiedades emergentes. Las jerarquías hacen referencia a la naturaleza multinivel de los sistemas (Figura 1), esto es, al surgimiento de niveles de organización anidados, donde cada uno de los niveles forma un todo respecto a sus partes y a su vez es miembro de un todo superior. De manera general podría describirse como unidad fundamental a las moléculas. Más allá de este nivel básico, se tienen niveles de descripción en los cuales las redes de interacciones dan lugar a nuevos niveles de integración y organización como lo son la célula, el individuo multicelular, y así hasta el ecosistema. Si se representa la célula como red, la misma quedará conformada por los organelos (nodos) y sus interacciones (enlaces). Si se desea representar otro nivel de organización como por ejemplo una comunidad ecológica, la red podría quedar establecida por las relaciones que se generan en cualquier trama trófica. De esta forma se hace evidente que una red en un nivel es a la vez subred de otra superior (Trewavas, 2006; Reuter et al., 2005; Solé et al. 2003; Holland, 1995).


Figura 1. Naturaleza multinivel de los sistemas biológicos. Se presentan cada uno de los niveles de organización anidado en otro nivel superior. Cada nivel de organización superior es una propiedad emergente de la interacción de los elementos del nivel anterior. En todos los niveles (e.g., celular, comunidad) se establecen relaciones entre las partes, las cuales pueden ser representadas fácilmente a través de redes.

Es importante considerar que cada nivel es una propiedad emergente del nivel anterior. Una propiedad emergente resulta del efecto no lineal de la interacción entre los entes componentes del sistema, de manera que no puede ser descrita con el conocimiento parcial de las partes o sus relaciones. De esta manera, puede ser más que la suma de las partes, como la estructura espacial de una población o ser diferente, lo que ocurre cuando se generan nuevos niveles de integración (Reuter et al., 2005; Holland, 1995). Quizás sea adecuado decir que una propiedad emergente es algo más que la suma de las partes, ya que en la mayor parte de los casos propiedades completamente diferentes surgen de la interacción entre los componentes. Por ejemplo, las propiedades que hacen del agua una molécula fundamental para la vida no pueden inferirse ni obtenerse a partir de las propiedades separadas del hidrógeno y del oxígeno, aún cuando se puedan entender los detalles mecánico cuántico implicados en la formación de la molécula (Solé & Bascompte, 2006). El mismo razonamiento se puede emplear en la biología: la vida es un buen ejemplo de ello. Los ácidos nucleicos, proteínas o lípidos no están vivos por si solos, es la cooperación entre los componentes lo que genera patrones de autoorganización que se integran y permiten el desarrollo de la vida. Es claro entonces que un nivel emergente, o superior en la jerarquía de organización no está desligado de los inferiores y que así como éste restringe la actividad de las partes, las mismas en su interactuar definen el nivel superior (Solé & Bascompte, 2006; Solé & Goodwin, 2000).


Un organismo que permite ilustrar cómo las propiedades emergentes están relacionadas con la naturaleza multinivel de los sistemas biológicos es el protozoario Dictyostelium discoideum (Phylum Amoebozoa), ya que en su dinámica de relaciones (intra y extra celulares) genera patrones de organización en dos escalas, individual y colonial, siendo esta última una propiedad emergente de las interacciones celulares con el entorno. De este modo, en función de la disponibilidad de recursos alimenticios Dictyostelium se reproduce de dos maneras diferentes. Cuando el ambiente es rico en recursos se divide por fisión binaria (división simple, Figura 2, Mecanismo I). Pero, cuando las células se enfrentan a estrés alimenticio, una célula cualquiera emite señales químicas que son recibidas y reforzadas por las vecinas. Esta señal activa la formación de un ensamblaje multicelular del orden de 104 a 105 células que facilita la supervivencia a períodos de inanición. Tal estructura reproductiva posee un tallo que sirve de soporte de un cuerpo fructífero (Figura 2, Mecanismo II). El cuerpo fructífero encapsula células con paredes resistentes o esporas que, cuando las condiciones de estrés desaparecen, germinan liberando amebas que se mueven libremente en busca de alimento (Solé & Goodwin, 2000).

Figura 2. Mecanismos reproductivos de Dictyostelium discoideum. Este organismo se reproduce de dos maneras diferentes en función de su dinámica de relaciones con el entorno. Cuando el ambiente es rico en recursos se divide por fisión binaria (mecanismo I). Cuando el entorno es pobre, se activa una red de señalización que permite el agrupamiento y posterior surgimiento del nivel colonial (mecanismo II).

Estudiando las redes de la naturaleza: Breve repaso histórico.

Desde la perspectiva de la biología vitalista-organicista, la ecología (fines del siglo XIX-comienzos del siglo XX), la teoría general de sistemas (cuyos conceptos básicos fueron acuñados entre otros por el biólogo Ludwing von Bertalanfy entre los años 40 y 50) e inclusive desde la teoría autopoietica de Maturana & Varela en los años sesenta, la biología ha sido pieza fundamental en el desarrollo de la Teoría de Sistemas Complejos. Paradójicamente, su incidencia real en el campo biológico fue casi inexistente hasta hace algunas décadas atrás (Capra, 1996). Es por eso, que aún cuando ciertos fenómenos biológicos fueron representados en forma de redes por algunos autores, estos esfuerzos corrieron en la mayor parte de los casos de manera independiente a la Teoría. Es así como se pueden encontrar desde representaciones ilustrativas de fenómenos a través del uso de redes –como Krebs y Calvin (década de los 30) quienes representaron, como redes, las interacciones entre moléculas pertenecientes a los ciclos del ácido cítrico y a las rutas del carbono en la fotosíntesis- hasta investigaciones de carácter cuantitativo que emplearon la teoría de grafos como aproximación. Por ejemplo, se pueden citar los trabajos de Jacob & Monod (1961) quienes representaron sistemas de regulación de la expresión de genes como redes de circuitos, los estudios de S. Kauffman (desde 1969 en adelante) sobre el surgimiento espontáneo de metabolismos a través del uso de redes booleanas aleatorias, las investigaciones en tramas tróficas realizadas en ecología por R. May (1972) o más recientemente los estudios sobre modelos evolutivos de cooperación de Nowak & May (1992).

A finales de los años noventa, los trabajos del grupo de investigación de Barabási en la Universidad de Notre Dame (Estados Unidos), caracterizaron en términos de mecánica estadística un gran número de grafos que representaban redes reales de diversa naturaleza, y son estos estudios los que marcan el inicio de la Teoría de Redes como línea importante de investigación en el área de estudios de la complejidad. Es así como llegó una herramienta de análisis poderosa a una disciplina a la biología.

La importancia de los resultados del grupo de Barabási (para revisiones recientes consultar Albert & Barabási, 2002; Newman, 2003; Dorogovtsev & Mendes, 2003) radica en el hallazgo de patrones de organización estructural -topología o arquitectura- similar entre redes reales de diversos orígenes. Esto mostraba la posibilidad de que redes biológicas tuvieran afinidades con redes tecnológicas, lo cual sugería un principio común de organización y permitía encontrar planes de organización estructural básicos para todos los sistemas (Solé et al., 2003). El patrón inicialmente descrito fue denominado Libre de Escala, puesto que su estructura es independiente el tamaño del sistema (i.e., invarianza de escala). Esta topología se caracteriza por una distribución heterogénea de enlaces, donde pocos nodos están muy conectados y muchos están poco conectados. En términos biológicos estas arquitecturas fueron rápidamente observadas en una amplia variedad de redes, desde metabólicas hasta ecológicas. Resultados posteriores han mostrado ciertas limitaciones en los métodos de evaluación estadística de la arquitectura de las redes, concernientes al ajuste de la distribución de grados (Stumpf et al., 2005) y al tamaño de la muestra a estudiar, lo cual ha hecho considerar con más cuidado las conclusiones alcanzadas sobre la universalidad de tal patrón de relaciones (May, 2006).

No obstante, el marco teórico-conceptual que provee el estudio de los sistemas como redes resulta de gran ayuda para responder preguntas claves en biología, relacionadas al diseño y mantenimiento de los sistemas biológicos, como por ejemplo, ¿qué mecanismos están detrás de las regularidades topológicas de las redes?, ¿qué aspectos de la arquitectura del sistema afectan su funcionamiento?, ¿cuál es el origen de la homeostasis de un sistema?, ¿cómo emerge la complejidad?. Para ilustrar algunos de los usos potenciales y conocidos del análisis a través de redes, se presentan a continuación algunos ejemplos.

El efecto mundo pequeño en la propagación
de enfermedades transmitidas por vectores.
Un ejemplo de la influencia de la arquitectura de la red.

El uso de redes en el análisis de la transmisión y diseño de estrategias de control de enfermedades provee de un buen ejemplo donde la data enriquece al trabajo teórico. Existen estudios empíricos y teóricos sobre enfermedades de contagio directo y transmitidas por vectores (Mason & Verwoerd, 2006; May, 2006; Newman, 2003; Liljeros et al., 2001).

El trabajo de Boots & Sasaki (1999) es un ejemplo ilustrativo de las potencialidades del uso de redes en el área de ecología y epidemiología. Modelos clásicos de evolución de virulencia en parásitos -bacterias y virus- (May & Anderson, 1979, 1983; Lenski & Anderson, 1995) han operado bajo el supuesto de que un individuo infectado tiene la misma probabilidad de contagiar a cualquier individuo susceptible, esto es, han ignorado los efectos espaciales. En la realidad las enfermedades transmitidas por vectores, como la malaria, cólera, dengue etc., presentan una mayor mortalidad del hospedero (mayor virulencia) que algunas de las transmitidas por contagio directo como las enfermedades gastrointestinales producidas por la Salmonella. Una característica importante de las primeras es que el patógeno alcanza a individuos más distantes mientras que las segundas tienen un efecto más local. Por esta razón los autores propusieron investigar el efecto de la distancia en la tasa de transmisión y virulencia de este tipo de enfermedades a través de un modelo de redes tipo rejilla, donde cada nodo representa un sitio que puede contener a un hospedador o estar vacío. El hospedador (H) puede ser susceptible o infectado. Los H susceptibles se reproducen a una tasa r llenando los espacios vacíos, mientras que los infectados no se reproducen (Figura 3). Ambos mueren a una tasa de mortalidad especificada en el modelo. La infección se transmite de infectados a susceptibles de dos formas, por contacto directo en el vecindario cercano o de manera aleatoria hacia vecindarios más lejanos con probabilidad P. De este modo los enlaces representan la transmisión de la enfermedad por las dos vías mencionadas. Existen i cepas de parásitos que difieren en su tasa de transmisión (que puede mutar) y producen cambios en la tasa de muerte de los H (virulencia).

Figura 3. Modelo de Boots & Sasaki (1999).Se representa en forma de rejilla la estructura espacial de la población de hospedadores. Cada nodo representa un espacio, vacío u ocupado por un individuo en estado susceptible (S) o infectado (I). Los enlaces modelan la transmisión de la enfermedad, con probabilidad de contagio 1-P si es transmisión directa, o P si la transmisión ocurre por medio de vectores (Figura tomada de Boots & Sasaki,1999).

El objetivo de este trabajo fue determinar el nivel de virulencia evolutivamente estable. Sus resultados indican que cuando la infección ocurre predominantemente a nivel local (contagio directo) la virulencia es menor que si se produce globalmente (transmisión por vectores). Además muestran que para estados intermedios de transmisión la virulencia incrementa en la medida que aumenta la conectividad (en la medida en que la red se hace pequeño mundo) lo cual refuerza la importancia de considerar efectos espaciales en este tipo de modelos. Los resultados concuerdan con los patrones empíricos de infección. Esto es importante porque dado que nuestras sociedades modernas tienden a estar cada vez más conectadas, es de esperarse, que un número mayor de infecciones se produzcan a distancia, y se hagan cada vez más virulentas.

Redes de interacciones proteína-proteína.
Un ejemplo de análisis de la estabilidad del sistema.

El trabajo de Jeong y colaboradores (2001) muestra las posibilidades de examinar sistemas de interacción proteína-proteína (IPP) a través del análisis de vulnerabilidad realizado a la red de IPP del hongo unicelular Saccharomyces cerevisiae. Los autores representaron las 1870 proteínas como nodos y las 2240 interacciones como sus enlaces, encontrando que la topología de esta red se comportaba como una red Libre de Escala. Lo relevante de esta arquitectura para la estabilidad del sistema es que se muestra frágil ante la remoción de nodos altamente conectados y robusta ante la remoción aleatoria de nodos (Albert et al., 2000). Los autores simularon los dos tipos de remociones para la red de S. cerevisiae encontrando un comportamiento similar al descrito. Simular una pérdida aleatoria de nodos equivale en este contexto a la mutación aleatoria. Resultados de experimentos sistemáticos de mutaciones inducidas mostraron que la levadura es altamente tolerante a la remoción de un número sustancial de proteínas, lo cual era congruente con lo esperado debido a su topología.

Pero para demostrar que tal tolerancia era debida a la arquitectura de la red, las proteínas poco conectadas debían ser no esenciales, mientras que las proteínas esenciales debían estar altamente conectadas. Para probar esto, los autores ordenaron las proteínas en función del número de enlaces que presentaban y las correlacionaron con el efecto fenotípico que producía su pérdida, suponiendo que la pérdida de proteínas esenciales causaba efectos letales sobre la levadura. Los resultados mostraron que aunque sólo el 0.7 % de las proteínas resultó ser esencial, su pérdida era letal en el 62% de los casos, lo cual les permitió concluir que las proteínas esenciales podrían ser los hubs, ya que ante la remoción de los mismos el sistema colapsaba. Lo realmente valioso de este estudio de una red real, es que muestra novedosas herramientas para la búsqueda de elementos claves en el mantenimiento del sistema así como formas de análisis más integrales a la hora de evaluar la estabilidad de la red.

Ejemplos del uso de medidas topológicas en redes tróficas.

Existe una controversia de larga data en ecología, acerca de cuáles son las características estructurales de las tramas tróficas y si exhiben propiedades invariantes (May, 1986; Pimm et al., 1991; Levin, 1992). Parte de la polémica se basaba en la calidad de los datos (baja resolución taxonómica y tamaño de las redes estudiadas) y la confianza de las conclusiones alcanzadas a través del uso de los mismos, sin embargo en la actualidad se disponen de más y mejores datos (Dunne, 2002). Ello ha permitido el uso de herramientas del análisis de redes, obteniéndose resultados interesantes, imposibles de realizar empleando las técnicas disponibles para la ecología clásica.

Por ejemplo, se ha podido estudiar la distancia promedio, el coeficiente de agrupamiento y la distribución de grados de las redes reales. Todas estas medidas interpretadas en un contexto ecológico, brindan importante información sobre la integración y organización de la trama. Por ejemplo, investigaciones recientes muestran que las distancias promedio obtenidas en los análisis de redes tróficas asociadas a ecosistemas acuícolas son muy similares a las esperadas para redes tipo Mundo Pequeño. Esto significa que por distintos que sean los ecosistemas, por lo general existe un número acotado de niveles tróficos a través de los cuales puede fluir la energía. Mientras que sus coeficientes de agrupamiento son afines a los esperados de redes aleatorias tipo Erdös y Rényi (Dunne, 2002). Por otra parte, se ha encontrado que existe una relación entre la complejidad la red (medida en términos de conectancia) y la forma de su distribución de grados. Redes con conectancias altas, media o bajas presentan distribuciones del grado uniformes, exponenciales y libres de escala respectivamente. Esto además de evidenciar que las redes tróficas presentan características sui géneris propias de diversos tipos de arquitecturas (i.e., Aleatorias, Mundo Pequeño, Libres de Escala) tiene implicaciones en la estabilidad de la trama, tal como demostraron Albert & Barabási (2000). Otras investigaciones (Montoya & Sole, 2003) han abordado la posible relación entre la riqueza (número de especies) en la trama y las características de su distribución de grados. Sus resultados sugieren que existen restricciones de escala en las redes tróficas. Según esto, redes de riquezas bajas (i.e., menores de 70 especies) se caracterizan por presentar arquitecturas tipo Poisson, mientras que redes de mayores riquezas presentan arquitecturas tipo Libres de Escala. Otros autores como Garlaschelli et al. (2003) han sugerido que las tramas tróficas se caracterizan por presentar exponentes de escala universales (universal scaling exponents). Ambos resultados pueden en principio indicar que en su organización subyacen principios de organización comunes a todas.

Si bien estos resultados están lejos de ser definitivos, muestran la potencia de la herramienta cuando es aplicada a problemas propios del nivel de organización ecológico. Esto es relevante en términos teóricos y empíricos ya que al poder hacer predicciones sobre las respuestas funcionales de sistemas reales ante cambios estructurales se puede llevar a cabo un mejor manejo del ecosistema, lo que en términos de conservación no sólo es necesario, también es urgente.

¿Qué puede hacerse en el futuro?

Dentro de las diversas áreas de investigación biológica existen algunas que merecen particular atención. Por ejemplo, en la actualidad, gran parte de las líneas investigación en redes biológicas está orientada al estudio de regulación genética, de redes metabólicas, de interacción de proteínas, o del interactoma (Mason & Verwoerd, 2006). Es fácil prever que esta tendencia se mantendrá en lo futuro, y que permitirá en primer lugar la generación de medidas ad hoc, relacionadas al estudio de aspectos particulares, como la degeneración de las redes, identificación de módulos funcionales, estudio de tipos de interacción, identificación de moléculas interfase entre subredes (i.e., sospechosos habituales), identificación de bucles de retroalimentación, etc. En segundo lugar, tendrán que surgir modelos alternativos al Libre de Escala para la formación de las redes moleculares (Stumpf et al., 2005), que tomen en cuenta los conocimientos que se tienen sobre la evolución del genoma, por ejemplo, la relación entre duplicación y la formación de familias de genes, el efecto de los diferentes modelos de mutación (infinitos alelos, infinitos sitios y mutación paso a paso), etc. Estos avances significarían un cambio profundo en un área que hasta ahora han adolecido de un profundo reduccionismo (Kauffman, 1993; Capra, 1996).

En otros campos como el de la morfología, es particularmente interesante estudiar las arquitecturas de las redes asociadas a las relaciones entre las estructuras corporales, ya que esta es una novedosa forma de abordar los problemas clásicos (Olson & Miller, 1982) de integración morfológica, a la vez permiten identificar restricciones en la evolución de las morfologías (Griffon, 2006).

En el área de la ecología gracias a la incorporación de la información espacial se están produciendo resultados teóricos interesantes. Esto no sólo incrementa la riqueza de los modelos, también ha mostrado que genera tendencias diferentes, tal es el caso de estudios de evolución de la socialidad a través de la cooperación (Nowak & May, 1992; Lieberman et al., 2005; Ohtsuki et al., 2006; Solé & Bascompte, 2006). En el campo empírico, se observan los esfuerzos en el mejoramiento de la calidad de los datos mediante el estudio de redes de mayores dimensiones y resoluciones taxonómicas más homogéneas (Dunne, 2002). Como ya se ha comentado, en el campo de la ecología el estudio de redes se ha visto limitado al análisis de redes reales pequeñas (de 20 a 200 especies), en las cuales la información concerniente a los elementos es muy heterogénea, estando en muchos casos la red compuesta por nodos que representan niveles de detalle muy desigual, como por ejemplo: estados ontogenéticos particulares (e.g., diferentes estados larvales de una especie), especies tróficas (conjunto de organismos que comparten presas o depredadores), grupos altamente agregados de taxa (e.g., microbios, protistas) o clasificaciones a diferentes niveles del sistema jerárquico (e.g., familia, genero, especie), lo que genera datos altamente ruidosos y poco confiables.

Estos avances permitirán seguramente, seguir profundizando en el estudio de características estructurales de las redes, y eso debería despejar dudas largamente albergadas sobre propiedades invariantes en la arquitectura de las redes ecológicas u otras más específicas como por ejemplo, las restricciones que el flujo de energía a través de la red impone en el número de compartimientos posibles, cómo se ejerce el control en las tramas tróficas (i.e., de arriba hacia abajo o viceversa), la relación entre el envejecimiento de los nodos y los procesos de extinción/especiación (Montoya et al., 2006), la identificación de especies claves, entre otros.

En términos generales, en biología, una importante tarea es establecer las relaciones entre las medidas utilizadas en el estudio de redes (e.g., coeficiente de agrupamiento, intermediación, distancia promedio) con medidas de relevancia biológica como valor adaptativo, homeostasis, etc. Esto ayudará a esclarecer la relación arquitectura/ función biológica, lo que es equivalente a establecer la relación entre genotipo y fenotipo, o entre comunidad y los atributos del ecosistema. Finalmente, dada la naturaleza multinivel y anidada de los sistemas biológicos, sin lugar a dudas un campo de estudio de particular importancia es el relacionado a las interacciones entre redes pertenecientes a diferentes niveles, es decir, conocer el impacto que producen las upward y downward causation (Proulx et al., 2005).

Por otra parte habrá que concentrar esfuerzos en análisis dinámicos de redes, puesto que hasta ahora los mismos se han centrado en análisis estáticos (Strogatz, 2001) y aunque esto ha generado importantes avances, no deja de ser estudios centrados en un punto en la evolución dinámica del sistema (Proulx et al., 2005). Realizar esta integración, plantea retos teóricos relevantes. En primer lugar, las nuevas herramientas deben tomar en cuenta que (i) las redes ganan o pierden nodos, (ii) las propiedades de un nodo pueden cambiar en el tiempo, (iii) el número y las propiedades de los vínculos pueden variar y que (iv) fuerzas externas a las redes actúan sobre éstas (Proulx et al., 2005).

Una importante labor, en la que se enmarca la presente revisión, consiste en intentar sistematizar y divulgar el torrente de información que se genera a un ritmo vertiginoso en el área de redes. Es una tarea ambiciosa, pero necesaria dada la gran cantidad de diferentes disciplinas que convergen en el estudio de redes. Quizás la consecuencia más importante de ello sea el establecimiento de puentes de comunicación entre diferentes tipos de saberes y la generación de un conocimiento más plural y universal, tan necesario en la actualidad para enfrentar los retos que la coyuntura histórica impone.

Referencias bibliográficas

1.-Albert, R. & Barabási, A.-L. 2002. Statistical mechanics of complex networks. Reviews of Modern Physics 74, 47-97
2.-Albert, R., Jeong, H. & Barabási, L.A. 2000. Error and attack tolerance of complex networks. Nature 406, 378-382
3.-Barabási, A.L. & Z., Oltvai. 2004. Network Biology: Understanding the cell´s functional organization. Nature 5, 101-113
4.-Boots, M. & A., Sasaki. 1999. ‘Small worlds’ and the evolution of virulence: infection occurs locally and at distance. Proc.R.Soc.B, 266, 1933-1938
5.-Capra, F. 1996. La trama de la vida. Una nueva perspectiva de los sistemas vivos. Editorial ANAGRAMA, Barcelona.
6.-Dorogovtsev, S. & J., Mendes. 2003. Evolution of Networks. From Biological Nets to Internet and www. Oxford.
7.-Dunne, J.A., R.J. Williams, and N.D. Martinez. 2002. Food-web structure and network theory: the role of connectance and size. Proceedings of the National Academy of Sciences USA 99,12917-12922
8.-Garlaschelli, D., Caldarelli, G., & Pietronero, L. 2003. Universal scaling relations in. food webs Nature, 423, 165–168
9.-Griffon, D. 2006. Evolución y análisis comparativo de la venación del ala de los insectos. Tesis de maestría. Postgrado en entomología. Fagro-UCV.
10.-
Holland, J.H. 1995. Hidden Order. How Adaptation Builds Complexity. Helix Books. USA.
11.-Jeong, H., Mason, S.P., Barabási, A.L., & Z.N., Oltvai. 2001. Lethality and centrality in protein networks. Nature 411(3), 41-42
12.-Jeong, H., Tombor, B., Albert, R., Oltvai,Z.N. & A.-L., Barabási. 2000. The large-scale organization of metabolic networks. Nature 407, 651-654
13.-Kaufmann S. 1993. The origins of order: Self-organization and selection in evolution. Oxford University Press, New York, 343–356
14.-Lenski, R. & R.M.,May. 1995. The evolution of virulence: a reconciliation between two conflicting hypotheses. J.Theor.Biol. 169, 253-265.
15.-Levin, S. A. 1992. The problem of pattern and scale in ecology. Ecology 73(6), 1943-1967
16.-Lieberman E, C Hauert, MA Nowak (2005). Evolutionary Dynamics on Graphs, Nature 433: 312-316
18.-Liljeros, F., Edling,. C.R., Amaral, L.A.N., 2001. The web of human sexual contact Nature 411, 907-908
19.-Loehle, C. 2004. Challenges of ecological complexity. Ecological Complexity 1, 3-6.
20.-Mason, O. & M., Verwoerd. 2007. Graph Theory and Networks in Biology, To appear in IET Systems Biology, 2007
21.-Mason, O. R M., Verwoerd. 2006. Graphs Theory and Networks in Biology. arXiv:q-bio.MN/0604006v1
22.-Maturana, H. & F., Varela. 1994. De máquinas y seres vivos. Autopoiesis: la organización de lo vivo. Quinta edición. Editorial Universitaria S.A., Chile
23.-May, R. 2006. Network structure and the biology of populations. TRENDS in Ecology and Evolution, 21(7), 395-399
24.-May RM. 1986. The search for patterns in the balance of nature: advances and retreats. Ecology 67, 1115-1126
25.-May, R.M. & Anderson, R.M.1983. Epidemiology and genetics in the coevolution of parasites and host. Proc.R.Soc.Lond.B 219, 281-313
26.-May, R.M. & Anderson, R.M. 1979. Population dynamics of infectious diseases. II. Nature 280, 445-461
27.-May, R. 1972. Will a Large Complex System be Stable?. Nature. 238, 413-414
28.-Maynard Smith, J. & E., Szathmáry. 1999. The origins of life. From the Birth of life to the Origins of Language. Oxford University Press. UK.
29.-Montoya JM, Pimm SL, Solé RV. 2006. Ecological networks and their fragility. Nature 442 (7100), 259-64
30.-Montoya, J.M. & Solé, R. 2003. Topological properties of food webs: from real data to community assembly models. Oikos 102, 614-622
31.-Montoya, J.M. & Solé, R. 2002. Small-World Patterns in Food Webs. J. Theor. Biol. 214, 405-412
32.-Newman, M. E. J. 2003. Structure and function of complex networks. SIAM Review 45, 167-256
33.-Nowak, M. & R., May. 1992. Evolutionary games and spatial chaos. Nature, 359, 826 – 829
34.-Ohtsuki H, C Hauert, E Lieberman, MA Nowak. 2006. A simple rule for the evolution of cooperation on graphs and social networks Nature 441, 502-50
35.-Olson, E. C. & Miller, R. L. 1982. Morphological Integration. University of Chicago. Press, Chicago. 1982. pp. 319–353.
36.-Pascual, M. 2005. Computational Ecology: From the Complex to the Simple and Back. PloS Computational Biology, 1, 0101-0105
37.-Pimm S.L., Lawton J.H. & Cohen J.E. 1991 Food web patterns and their consequences. Nature 350, 669-674
38.-Proulx, S.R., Promislow, D.E.L. & Phillips, P.C. 2005. Netwotk thinking in ecology and evolution. TRENDS en Ecology and Evolution, 20, 345-353
39.-Réka, A. & A.L., Barabási. 2002. Statistical mechanics of complex networks. Reviews of Modern Physics 74, 47-97
40.-
Reuter, H., Hölker, F., Middelhoff, U., Jopp, F., Eschenbach, C. & Breckling, B. 2005. The concepts of emergent and collective properties in individual-based models –Summary and outlook of the Bornhöved case studies. Ecological Modelling, 186, 489-501
41.-Solé, R. & J., Bascompte. 2006. Self-Organization in Complex Ecosystems. Princeton University Press.
42.-Solé, R., Ferrer-Camacho, R., Monotya, J. & S., Valverde. 2003. Selection, Tinkering, and Emergente in Complex Networks. Crossing the Land of Tinkering. Complexity 8 (1), 20-33
43.-Solé, R. & B., Goodwin. 2000. Signs of life. How Complexity pervades biology. Basics Books, NY.
44.-Strogatz, S.H. 2001. Exploring complex networks. Nature 410, 268-276
45.-Stumpf MPH, Ingram PJ, Nouvel I, Wiuf C. 2005 Statistical model selection methods applied to biological network data. Lect Notes Comput Sc (Title: Trans Comp Sys Biol III) 3737, 65-77.
46.-Stumpf, M.P.H., Wiuf, C. & R., May. 2005. Subnet of scale-free networks are not scale-free: sampling properties of networks. Proc. Natl.Acad.Sci.U.S.A. 102, 4221-4224
47.-Trewavas, A. 2006. A Brief History of Systems Biology. The Plant Cell 18, 2420-2430
48.-von Bertalanffy, K.L. 1968. General System theory: Foundations, Development, Applications, New York: George Braziller.

domingo, 16 de septiembre de 2007

Sobre la inestabilidad inherente al monocultivo

Diego Griffon
Ma. Daniela Torres-Alruiz

Historia

El inicio de esta historia se remonta tal vez a 10.000 años, hasta lo que se conoce como la Revolución Neolítica, momento en el cual nuestra especie cambio sus hábitos migratorios por un comportamiento sedentario.

La razón fundamental para este cambio se debió a que descubrimos como incrementar la capacidad de carga de un ecosistema, transformándolo en un agroecosistema. Siendo esta nuestra primera experiencia en el diseño de ecosistemas.

La revolución neolítica es sin lugar a dudas la revolución tecnológica más importante que ha experimentado el ser humano. Produjo seguramente un profundo cambio en nuestra psiquis y en nuestra manera de comprender el mundo. En ese momento se modificó nuestra relación con la naturaleza, nació nuestra obsesión de dominación y tal vez las jerarquías sociales (Zerzan, 2001).

Ese camino que emprendimos, resultó en la transformación de paisajes como este (Figura 1):


Figura 1. Ecosistema natural.


En estos otros (Figuras 2 y 3):

Figura 2. Monocultivo.


Figura 3. Monocultivo.

Es decir, provocó una abrumadora disminución de la biodiversidad en ciertos ecosistemas. Esta ansia de dominación hacia la naturaleza y de reducción de la biodiversidad alcanzó su punto más álgido con el surgimiento de otra revolución, la llamada: Revolución Verde.

En el marco de esta nueva revolución, el ser humano llegó a un punto tal de alienación, que desconoció todas las características y complejidades de la naturaleza, reduciéndolas a simples modelos mecanicistas.

Es por esta razón que se conoce a este tipo de agricultura como “Industrial”, no por las escalas con las que trabaja, sino por la lógica como en ella se maneja el sistema. Este esquema asume que el agroecosistema obedece a las mismas reglas que una industria. Supone que los problemas agrícolas se originan de causas similares a los que se pudiesen presentar en una línea de producción industrial.

En este marco conceptual, cualquier elemento diferente a los deseados por el gerente de la “Industria Agrícola” debe ser eliminado del sistema (Figura 4).


Figura 4. Eliminación de la biodiversidad asociada en un monocultivo.

¿Cuáles son los efectos ecológicos de este tipo de manejo del agroecosistema?

La gran mayoría de las prácticas que se hacen en el agroecosistema están relacionadas con disminuir la biodiversidad asociada e impedir que el proceso de sucesión ocurra (Figura 5).

Figura 5. Sucesión ecológica.

Estos modelos de producción se conocen como sistemas de sucesiones tempranas agrícolas, en ellos se presentan una serie de características:

I. La biodiversidad del ecosistema es llevado a cero cada ciclo.
II. Son favorecidas las especies invasoras (con estrategias r).
III. Los ciclos de los nutrientes se ven alterados, la biomasa no se acumula ni se cicla.
IV. El flujo de la energía no es en forma de red, sino cuasi-lineal y dirigido artificialmente.
V. Los ciclos tróficos son rotos.

El análisis de estas características es indispensable para entender el origen de las inestabilidades inherentes al monocultivo.

La primera característica hace referencia a que cuando se aplica el esquema agrícola convencional a cultivos de ciclo corto (gran mayoría de los cultivos), este involucra el laboreo intensivo del suelo al principio de cada ciclo (Figura 6). Haciendo de esta manera tabla rasa con la ya de por si escasa biodiversidad e incrementando los desequilibrios en el sistema.

Figura 6. Laboreo del suelo. Destrucción de la biodiversidad.

Sobre la segunda característica de los sistemas agrícolas de sucesiones tempranas, muy a grosso modo, y pecando de inexactitud, podemos decir que las especies que intervienen en el proceso de sucesión pueden ser divididas en dos grupos de acuerdo a sus estrategias, aquellas con estrategias tipo r, llamadas invasoras y aquellas con estrategias tipo K, llamadas dominantes (Figura 7). El resultado final de los sistemas de sucesiones tempranas es que las especies asociadas al agroecosistema (arvenses, insectos, hongos, etc.) presentan por lo general características como: alta tasa reproductiva, crecimiento rápido, buenos mecanismos de dispersión, etc. Todas estas características de las especies involucradas en los problemas de malezas, plagas y enfermedades.

Figura 7. Estrategias de las especies involucradas en la sucesión.

La tercera característica es un punto crucial, merece un Post para tratarla en detalle. Esta es una particularidad que diferencia los agroecosistemas tropicales de los de zonas templadas.

En el trópico se vive al día. Debido a las altas temperaturas características de estas zonas y a los ritmos de descomposición de materia orgánica que estas determinan, en los ecosistemas tropicales prácticamente no se acumula materia orgánica. Esta es la primera pista clave sobre la inestabilidad de los monocultivos en el trópico.

Cuando se amplía la frontera agrícola a partir de un bosque tropical, la cuenta bancaria de nutrientes esta muy próxima a cero y bajo un sistema que involucra dejar el suelo descubierto (i.e., libre de arvenses), a la merced de gotas de lluvia con grandes energías cinéticas y gran potencial erosivo, la cuenta bancaria es rápidamente llevada a cero. Este sistema sin sustento nutricional interno, se sostiene gracias a los nutrientes incorporados por el agricultor.

Esta rápida degradación de los suelos en los agroecosistemas tropicales representa una de las mayores externalidades negativas del modelo de la Revolución Verde.

Sobre las dos últimas características de los sistemas agrícolas de sucesiones tempranas centraremos esta discusión, y como se verá, ambas hacen referencia básicamente al mismo efecto del monocultivo.

El objetivo de la agricultura convencional es que el 100% de la producción del agroecosistema entre al mercado, esto es tanto como desear que, salvo las perdidas inherentes al segundo principio de la termodinámica, toda la biomasa de los frutos salga del sistema. Lo que involucra una secuencia lineal de transformación de la energía y materia desde las fuentes hasta los mercados (Figura 8).

Figura 8. Cadena trófica ideal en el marco de la Revolución Verde.

Este es un deseo imposible y solo sirve para generar ganancias a las empresas de pesticidas. Sin importar que esfuerzo se haga, los flujos de energía y nutrientes nunca serán completamente lineales (Figura 9). La ambición de simplificar a la fuerza la inherente complejidad de la naturaleza es otra de las causas de la inestabilidad del monocultivo, como se demostrará al final de esta discusión.

Figura 9. Cadena trófica real.

Los esfuerzos por linealizar los flujos tienen el efecto negativo de romper la mayoría de la redundancia y ciclos tróficos, por lo que los monocultivos carecen de mecanismos internos de regulación poblacional. Razón por la cual son tan abundantes los problemas de explosiones poblacionales (e.g., de insectos fitófagos). Siendo esta otra externalidad negativa del modelo de la Revolución Verde.

Si el agrónomo se escapa del modelo de la Revolución Verde e intenta analizar el agroecosistema como lo que realmente es: ¡un ecosistema!. Puede apreciar que es un sistema complejo, compuesto por múltiples elementos que interactúan de diversas formas (Figura 10). Estos sistemas en muchos casos son sensibles a las condiciones iniciales, lo que significa que pequeñas modificaciones en la configuración del sistema pueden tener resultados desproporcionados. Otra característica de los sistemas complejos son las propiedades emergentes. Una propiedad emergente no depende de los elementos por separado, sino que surge de la interacción entre estos. Entre las propiedades emergentes de los ecosistemas se encuentra la estabilidad u homeostasis. La homeostasis del agroecosistema es uno de los objetivos finales de la Agroecología, alcanzarla significaría que las regulaciones de los niveles poblacionales dentro del sistema serian independientes del productor.

Figura 10. Ecosistema como sistema complejo.

Por definición, una propiedad emergente como la homeostasis no puede ser entendida mediante el estudio por separados de los componentes del sistema. El enfoque de la Revolución Verde es Mecanicista-Reduccionista, por lo que no dispone de herramientas para abordar el fenómeno de manera adecuada. Esto ha generado los grandes problemas de plagas y enfermedades de hoy en día. Estos problemas no son inherentes a la agricultura como tal, sino a un modelo erróneo de aproximación al agroecosistema. Para analizar estos sistemas se hace indispensable estudiar el todo, lo cual se puede llevar a cabo en el marco de la Teoría de los Sistemas Complejos.

Se pudiese argumentar que estos análisis y devaneos teóricos son innecesarios dado que se conocen agroecosistemas estables en el trópico, como los conucos. Esto es completamente cierto, el sistema de cultivo tipo conuco, es un sistema que presenta todos los atributos (Figura 11) que deseamos reproducir en los sistemas a mayor escala. Sin embargo, hay que tomar en cuenta, como la evidencia lo demuestra, que los conucos en cada región son diferentes. Las particularidades de cada conuco se deben a las adaptaciones del sistema de producción a las características de cada región. El ajuste del conuco a las condiciones de cada localidad se llevó a cabo de manera paulatina mediante ensayo y error.

Figura 11. Conuco (tomada de Nuñes, 2005).

El problema se encuentra en que uno de los productos más nefastos de la Revolución Verde, fue homogenización en los sistemas de producción, esto trajo como consecuencia la pérdida de los conocimientos agrícolas ancestrales en vastas áreas geográficas.

El reajuste del modelo conuco a estas áreas, es un peso que no se puede dejar en manos del productor, este debe ser asumido por los centros de investigación agrícola. Si esta tarea se pretende realizar mediante bioensayos de campo, hay que tomar en cuenta que estos se deben realizar en tantas localidades como sitios se desee transformar. Lo que significa una empresa de dimensiones gigantescas.

Una alternativa es buscar en los ecosistemas naturales conocidos, las características generales de su arquitectura que les confieren estabilidad, para con base en esta información diseñar agroecosistemas que reproduzcan estos atributos. Esto se puede llevar a cabo mediante el análisis topológico de las tramas tróficas de ecosistemas naturales.

Análisis de tramas tróficas

Para estudiar las interacciones entre los componentes del ecosistema, se puede hacer uso de las herramientas de la Teoría de Sistemas Complejos, la cual es una parte fundamental (aunque muchas veces ignorada) del cuerpo filosófico de la Agroecología.

En Agroecología estos análisis tienen larga data, remontándose al trabajo clásico de Richard Levins y John H. Vandermeer (Levins y Vandermeer, 1990). Estos investigadores en un elegante articulo, demostraron con casos simplificados como la estructura de las relaciones tróficas en un agroecosistema son fundamentales en el comportamiento del sistema.

Uno de los ejemplos de Levins y Vandermeer se presenta en Figura 12A, esta figura muestra una cadena trófica lineal, compuesta por una planta (P), un insecto fitófago (F) y un insecto depredador (D). Se puede apreciar fácilmente que un incremento en la población de depredadores tendrá un efecto positivo en la de plantas al disminuir la población de fitófagos.

Figura 12. Redes tróficas. A, red lineal. B, red no lineal.

Levins y Vandermeer modifican ligeramente este sistema (Figura 12B), introduciendo un nuevo elemento: un insecticida (I) no específico con efectos negativos sobre F y D (rompiendo de este modo la linealidad del sistema). En este nuevo caso es interesante observar los efectos del nuevo elemento I sobre D. El insecticida I tiene un efecto directo sobre D debido a su toxicidad, pero también existe el efecto indirecto de I sobre D debido al envenenamiento de F, que es el alimento de D. Por su parte F se ve afectado negativamente por la toxicidad de I, pero esto es compensado por la disminución en la depredación de D, lo que es un efecto indirecto de la acción de I.

El uso del insecticida en este modelo incrementa las poblaciones de F. Esto no se debe a que D sea más susceptible al insecticida, sino a la estructura de la red (Levins y Vandermeer, 1990). El efecto neto de la introducción del insecticida es una disminución en la población de depredadores, generando esto lógicamente un aumento en la población de fitófagos. La moraleja de este ejemplo es que, en un sistema no lineal de solo 4 elementos, se desarrollan dinámicas que no pueden ser predichas mediante el estudio por separado de los elementos, por lo que, en el marco teórico de la Revolución Verde no se puede interpretar correctamente esta situación.

El fin último del análisis de las redes tróficas en la Agroecología es encontrar arquitecturas que generen estabilidad en la comunidad. Para realizar estos análisis hay que desplazar el foco de atención de los agroecosistemas a los ecosistemas naturales, dado que estos últimos son los sistemas que presentan la mayor homeostasis.

La diferencia fundamental, como ya se comentó, entre un agroecosistema y un ecosistema natural es la magnitud de la biodiversidad. Esto es particularmente cierto en los ecosistemas megadiversos tropicales, para hacerse una idea de la complejidad de estos ecosistemas basta observar la Figura 13.

Figura 13. Trama trófica acuática del Parque Nacional Morrocoy, Venezuela.

Cuando se trabaja con sistemas de estas magnitudes, los enfoques analíticos tipo Levins y Vandermeer son imposibles de realizar y se deben abordar con las herramientas de la mecánica estadística de redes complejas.

Los análisis de mecánica estadística de tramas ecológicas son un floreciente campo de estudio, que ya ha aportado interesantes resultados. Recientemente se ha sugerido (Montoya y Sole, 2003) que la arquitectura de las redes tróficas puede ser dividida estructuralmente de acuerdo a su riqueza (S) en dos clases. Aquellas que presentan riquezas bajas, se las clasifica como Poisson, en ellas todas las especies poseen un número similar de relaciones tróficas. Mientras que aquellas con riquezas altas, se las clasifica como Leyes de Potencia (también Libres de Escala), donde se encuentran pocas especies muy conectadas y la mayor parte con pocas relaciones.

Para entender esta clasificación es necesario conocer que es una distribución de grados, en el análisis de redes, el grado (k) de un nodo (elemento, especie) hace referencia al número de conexiones. En el contexto de las tramas tróficas si una especie tiene tres relaciones, entonces tiene grado 3 (k = 3). La distribución de grados es el histograma de frecuencias del número de nodos en cada grado. Que una red sea tipo Poisson, hace referencia a que su distribución de grados es Poisson (Figura 14a), una red Ley de Potencias hace referencia a que su distribución de grados es de esta forma (Figura 14b).

Figura 14. Redes tipo Poisson y Libres de Escala.

Montoya y Sole (2002) estudiaron la distribución de grados de las tramas tróficas de mejor calidad conocidas (11 en total), en ellas encontraron (Figura 15) que el ajuste de las tramas tróficas de S pequeño es bueno para distribuciones tipo Poisson, pero a medida que el valor de S aumenta este ajuste se pierde.

Figura 15. Distribución de grados de tramas tróficas reales. En las graficas las barras representan los valores observados y la curva el valor esperado para una distribución Poisson. (modificada a partir de Montoya y Sole, 2002).

En la tabla 1 se puede apreciar como la distribución de grados de las diferentes tramas tróficas cambia de acuerdo con los valores de S, en esta tabla también se puede apreciar que esta tendencia se mantiene sin importar a que tipo de ambiente pertenezca la trama trófica estudiada.

Tabla 1. Características de algunas tramas tróficas

Si esta es una tendencia general en la naturaleza, es decir, si la riqueza del ecosistema influye en su arquitectura, y la misma sobre sus respuestas potenciales, esto nos ofrece pistas acerca de cómo planificar la arquitectura del agroecosistema. La primera pista que este resultado nos ofrece es que, si tomamos en cuenta que un agroecosistema, por muy diverso que sea, nunca va a ser tan diverso como los ecosistemas naturales mas diversos, estos ecosistemas súper diversos no pueden ser el modelo a imitar, la escala de un agroecosistema es mas similar a la de un ecosistema natural de baja riqueza, es decir, un ecosistema con distribución de grados tipo Poisson.
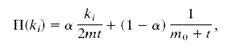
Una pregunta fundamental es ¿Por qué varía la distribución de grados con el valor de S? La respuesta a esta pregunta nos pudiese dar luces sobre los aspectos claves de la topología de la red que deberíamos reproducir en el agroecosistema para hacerlo homeostático.

Para responder esta pregunta re-estudiamos la arquitectura del conjunto de redes tróficas evaluadas por Montoya y Sole. Sin embargo, a nuestro parecer 11 tramas son demasiado pocas redes para establecer a partir de ellas principios generales, para aumentar el espacio muestral generamos mediante simulación redes tróficas tipo Ley de Potencia y Poisson, en el intervalo de riquezas (S=20 a S=150) en el cual ocurre el cambio de arquitectura. Evaluamos la estructura de estas redes en busca de variaciones en su eficiencia relacionadas a la riqueza y a la arquitectura.

Para simular redes tipo Poisson se utilizó el algoritmo clásico propuesto por Erdos y Renyi (1959), el cual consiste en establecer vínculos aleatoriamente a un número dado de nodos, en este algoritmo cada extremo de un vínculo se asigna de acuerdo a una probabilidad homogénea, que en el caso de la implementación utilizada se ajustó al valor del grado promedio de las tramas tróficas conocidas.

Para simular redes Libres de Escala, se utilizó el algoritmo propuesto por Pennock et al. (2002), en el cual los nodos con mayores grados tienen mayor probabilidad de obtener nuevos vínculos, mediante el mecanismo conocido como “los ricos se hacen más ricos”. En este algoritmo se asume que en un principio cada nodo de la red tiene una probabilidad base de obtener un vínculo; subsiguientemente esta probabilidad se hace mas compleja, donde ambos extremos de cada vínculo nuevo son asignados de acuerdo a una probabilidad mixta, α para la asignación preferencial de vínculos a nodos y 1- α para la asignación uniforme, de esta manera la probabilidad de que uno de los extremos de un vínculo se una a un nodo particular es:

Donde mo+t es el número total de vínculos y 2mt es la conectividad en el tiempo t.

Todas las simulaciones fueron realizadas con la restricción de que el grado promedio de las redes obtenidas fuese bajo, de acuerdo a los datos empíricos que sugieren que este es el caso en las redes tróficas (Tabla 2). En este caso se restringió este valor a 13 grados, que representa el valor promedio aproximado de las redes presentadas en la Tabla 2. Las simulaciones fueron efectuadas utilizando el programa Pajek ver. 1.06 (Batagelj y Mrvar, 2003)

Tabla 2. Grados promedio (Kprom) de algunas redes estudiadas en la literatura.


A las redes obtenidas producto de estas simulaciones se les calculo el Diámetro, esta medida representa la distancia más corta entre las dos especies más distantes de la trama trófica, medida como número de vínculos (relaciones tróficas) de separación. Formalmente el diámetro es la geodésica entre los dos nodos más distantes de la red. El diámetro es una medida de la cohesión de la trama trófica.

También se realizó un análisis de vulnerabilidad, este análisis consiste en evaluar como se ven afectadas las características de las redes con la eliminación de uno de sus nodos. En este caso se estudió el número de nodos que quedan aislados en cada una de las redes producto de la remoción de un nodo, en cada caso se removió el nodo de grado mayor, es decir, las perturbaciones se hicieron dirigidas. Esta perturbación simula el efecto de eliminar completamente de un agroecosistema un elemento (e.g., una plaga)

El diámetro de la red, fue evaluado en términos del porcentaje del tamaño total de la red (Figura 16), para de esta manera estandarizar la medida y poder hacer comparaciones entre las diferentes redes. Esta variable disminuye su valor a medida que S aumenta, tanto en el caso de las redes Poisson como en el de redes Libres de Escala. Su valor es siempre mayor para redes Libres de Escala que para redes Poisson, aunque esta diferencia se hace muy pequeña para S mayores de 80.

Figura 16. Porcentaje del tamaño de la red representado por el diámetro. En azul redes Poisson. En Fucsia redes Libres de Escala.

En el caso de las redes Libres de Escala, la disminución en la medida es más pronunciada, siendo la pendiente de esta disminución mayor en el caso de redes de menos de 80 nodos.

Es un hecho interesante el que la disminución en el diámetro de la red en términos de porcentaje del número total de nodos, muestre un cambio de pendiente en su taza de disminución de forma aproximadamente exponencial, observándose que la pendiente se hace muy suave para redes de S mayores de 80. Siendo este valor concordante con el cambio de arquitectura que se observa en las redes tróficas reales que han sido estudiadas.

En cuanto al número de nodos aislados luego de una perturbación (vulnerabilidad), este siempre es cero para redes Poisson, mientras que para redes Libres de Escala es muy variable (Figura 17), con una media de aproximadamente 5 especies aisladas.

Figura 17. Porcentaje de nodos aislados para redes Libres de escala. En azul valor del porcentaje de nodos aislados. En fucsia promedio de la medida.

Nuestros resultados son concordantes y complementan a los presentados por Albert et al., (2000), quienes plantean que las redes Poisson son moderadamente sensibles a la eliminación aleatoria o dirigida de cualquiera de sus nodos, mientras que las redes Libres de Escala son muy resistentes a ataques aleatorios, esto a expensas de una alta sensibilidad a ataques dirigidos. Siendo esta una de las mayores limitaciones de la arquitectura Libre de Escala.

Esto se pudiese interpretar en términos ecológicos como que bajo la arquitectura Libre de Escala, las redes tróficas pierden cohesión cuando se elimina el nodo mas conectado, por lo que miembros de la comunidad (diferentes a la especie removida) quedan aislados del flujo de energía de la red.

Llama la atención el hecho de que si se grafica (Figura 18) la probabilidad de que por azar se elimine el nodo mas conectado, en el rango de valores de S en el cual fueron efectuadas las simulaciones, se observa un comportamiento similar al del diámetro, donde esta probabilidad disminuye de manera exponencial, con una pendiente suave para redes de S mayor a 80.

Figura 18. Probabilidad de eliminar al nodo mas conectado de la red.

La eliminación de la especie más conectada en redes Libres de Escala es un evento potencialmente peligroso para la estabilidad del sistema, se puede apreciar fácilmente en la Figura 18, que esta probabilidad es mayor para tramas tróficas de riquezas menores de 80. Por lo que la arquitectura Libre de Escala es particularmente riesgosa para redes con valores de riqueza bajos. Este comportamiento coincide con el del diámetro, el cual disminuye de manera muy suave su pendiente para S mayores a 80, valores en los cuales el diámetro de las redes bajo las dos arquitecturas son prácticamente iguales (figura 16), por lo que ninguna arquitectura es superior a la otra en términos de diámetro.

La disminución en la probabilidad de eliminar por azar al nodo mas conectado varía muy poco para redes de S mayor a 80, por lo cual no se consigue mejoras notables en términos de estabilidad aumentando los valores de S. Valor que coinciden con la evidencia empírica del cambio de arquitectura de las redes.

De esta manera nos damos cuenta que la arquitectura libre de escala para redes de S bajos es altamente riesgosa, de modo que debería ser más bien rara en sistemas naturales de estos tamaños, como es el caso observado en la evidencia empírica.

Sobre los monocultivos y los cultivos asociados

Estos resultados tienen otras interesantes implicaciones cuando se los analiza pensando en un monocultivo. Un monocultivo es un ecosistema en el cual la abrumadora mayoría de las especies están relacionas mediante algún tipo de interacción ecológica (parasitismo, depredación, mutualismo, comensalismo, competencia, etc) con una especie (i.e., el monocultivo). Esta topología se conoce en el lenguaje de redes como arquitectura Estrella (Figura 19).

Figura 19. Red tipo Estrella.

Bajo esta arquitectura, todas las debilidades de las redes Libres de Escala en ecosistemas de bajas riquezas se ven llevadas al máximo. La arquitectura tipo Estrella es la más inestable de todas las topologías posibles, en ella la estabilidad y cohesión del ecosistema entero depende de una sola especie. Dada esta topología, cualquier perturbación que ocurra en el ecosistema va a afectar primero al monocultivo y a través de este a todas las demás especies. En el monocultivo no existe autorregulación posible y el sistema es óptimo en la propagación de perturbaciones. Bajo esta arquitectura cualquier perturbación alcanza a todo el sistema en promedio en dos interacciones ecológicas.

Esta es la razón fundamental de todos los problemas de desequilibrios inherentes al monocultivo y es también la razón por la cual no se consigue un similar en ningún ecosistema natural. La evolución de los ecosistemas se encarga de eliminar cualquier topología que sea inestable, la tozudez del ser humano se encarga de reproducirla por doquier.

Si nuestro propósito es construir agroecosistemas estables, que reproduzcan las topologías encontradas en la naturaleza. Tomando en cuenta los niveles de diversidad posibles en un agroecosistema. Estos resultados nos indican que la manera de diseñar sistemas estables es generando arquitecturas en las cuales las apuestas no estén en una sola especie. La evidencia nos muestra que es mejor hacer innumerables apuestas, todas relacionadas entre si, donde ninguna sea indispensable. Redundancia de relaciones, es la clave de la estabilidad de estos sistemas, esta permite que las perturbaciones se compensen y modulen en una red en la cual todas las especies deben tener aproximadamente el mismo número de interconexiones.

Bibliografía:

McCann, K.S. 2000. The diversity-stability debate. Nature, 405, 228-233.

Montoya J.M. & Solé R.V. 2003. Topological properties of food webs: from real data to community assembly models. Oikos, 102 (3), 614-62.

Montoya, J.M., Solé, R.V. y Rodríguez, M.A. 2001. La arquitectura de la naturaleza: complejidad y fragilidad en redes ecológicas. Ecosistemas. Revista de Ecología y Medio Ambiente, Año X, No.2, Mayo-Agosto.

Núñez. M. A. 2005. Bases cientificas de la agricultura tropical sustentable. In Motion Magazine. June 11. http://www.inmotionmagazine.com/global/man_base.html 01/12/06, 12:00PM.

Reka, A.; Jeong, H. y Barabasi. A. L. 2000. Error and attack tolerance of complex networks. Nature 406, 378-382.

Levins, R. y Vandermeer, J. "The agroecosystem embedded in a complex ecological community" in: Carroll R.C., Vandermeer J. and Rosset P., eds., Agroecology, New York: Wiley and Sons, 1990.

Zerzan, John. 2001. Futuro primitivo y otros ensayos. Viva la República.

.
.
---------------------------------------o----------------------------------
.
The Diary of Tortov Roddle: The Red Berry


miércoles, 12 de septiembre de 2007

Los retos del cambio de paradigma en la Agroecología. Estudio de un caso concreto: estimación de la biodiversidad.

Diego Griffon

Los fundamentos filosóficos de la Agroecología nacen del cambio de paradigma que se ha venido dando a todo nivel en ciencia y tecnología, este cambio se da desde la perspectiva mecanicista y reduccionista imperante en la ciencia actual, hacia la visión ecológica y holística de la ciencia de contra cultura (Capra, 1998), que no es mas que el cambio de paradigma que existe entre el modelo industrialista propuesto por la Revolución Verde y el modelo holistico propuesto por la Agroecología.

En este sentido, en la Agroecología se contempla una visión de ecología moderna, que integra las corrientes de la ecología profunda de Arne Naess, de la ecología social de Murray Bookchin y del ecofeminismo de Vandana Shiva, en contraposición con el enfoque netamente naturalista de la ecología convencional.

La diferencia fundamental entre estos enfoques, radica en que la ecología convencional es antropocéntrica, es decir se centra en el hombre, ve a este por encima o aparte de la naturaleza (Capra, 1998), en contraparte, la ecología holistica, no separa a los humanos, ni a ninguna otro elemento, del entorno natural, ve al mundo no como una colección de objetos aislados, sino como una red de fenómenos fundamentalmente interconectados e interdependientes, en ella se reconoce el valor intrínseco de todos los seres vivos y se ve a los humanos como una mera hebra en la gran red de la vida (Capra, 1998).

Esta ecología reconoce como la fuente originaria de las relaciones de explotación en nuestras sociedades, la naturaleza fundamentalmente anti-ecológica de muchas de nuestras estructuras sociales, económicas y de sus tecnologías, que no son mas que expresiones del sistema de dominación occidental, que en su ultima instancia se origina en las relaciones características del patriarcado, es decir, la dominación del hombre sobre la mujer, que es el prototipo de toda dominación practicada por el ser humano (Capra, 1998).

Esta ecología al nivel de las ciencias agrícolas centra su esfuerzo en reproducir hábitats en los cuales los seres humanos se puedan vincular con su entorno mediante relaciones diferentes a las de dominación, proponiendo alternativas a los desarrollos agrícolas preponderantes, con opciones como la Permacultura, la cual tiene por objetivo diseñar sistemas orientados a la creación de entornos humanos ecológicamente sostenibles y económicamente viables.

El fundamento de este enfoque se encuentra en el entendimiento de que un ecosistema es la expresión de las relaciones entre sus componentes, por lo que cuando se combinan sus componentes (e.g., individuos, poblaciones, comunidades) en unidades funcionales mayores (e.g. ecosistema), surgen o emergen nuevas características (propiedades emergentes) que no están presentes en los niveles inferiores (Odum y Sarmiento, 1998).

De esta manera, una propiedad emergente de un nivel de organización de la materia o unidad ecológica, es aquella que resulta de la interacción funcional de sus componentes, y de este modo no puede ser predicha a partir del estudio por separado de los componentes individuales aislados o desacoplados de la unidad total (Odum y Sarmiento, 1998). Por ejemplo, cuando se combinan en cierta configuración átomos de oxigeno e hidrogeno para generar agua, esta molécula tiene propiedades diferentes a las presentes en sus átomos constitutivos por separado (Odum y Sarmiento, 1998).

Es también un ejemplo esclarecedor la relación que se da entre hongos formadores de micorrizas y las raíces de las leguminosas, en ella la combinación Hongo-Raíz es capaz de extraer nutrientes minerales del suelo de manera imposible a los dos por separado (Odum y Sarmiento, 1998).

En este orden de ideas, se puede decir que los atributos de un ecosistema son propiedades emergentes, entre ellos es particularmente importante la homeostasis, es decir las fuerzas y contra fuerzas que amortiguan las oscilaciones y que operan en todo el sistema (Odum y Sarmiento, 1998).

Actualmente es ampliamente aceptado, que la recuperación rápida después de un disturbio en un ecosistema (i.e. homeostasis), pudiese ser favorecida por la presencia de muchas especies diferentes en el paisaje (Odum y Sarmiento, 1998) (para una visión opuesta ver May, 1973).

La estabilidad del ecosistema puede medirse por medio de cuatro parámetros (Odum y Sarmiento, 1998):

1. Resiliencia: capacidad de volver por si mismo al punto inicial luego de que ha cesado una perturbación.
2. Resistencia: oposición al cambio.
3. Transiliencia: capacidad congénita de cambio.
4. Resonancia: la obtención de la misma respuesta a disturbios repetitivos.

Se cree que la estabilidad por resiliencia, es favorecida por la presencia de muchas especies distintas en el paisaje, el hecho de si una alta diversidad de especies incrementa la estabilidad por resistencia es muy debatido por los ecólogos, pero experimentos de campo realizados por Tilman et al. (1996) indican que una alta diversidad de especies en comunidades de pastizal incrementó la estabilidad del sistema durante la sequía (Odum y Sarmiento, 1998).

Relevancia en el estudio de agroecosistemas

Un agroecosistema, es un ecosistema domesticado que en muchos aspectos se encuentra en una posición intermedia entre los ecosistemas naturales como herbazales y bosques, y los ecosistemas fabricados, como las ciudades (Odum y Sarmiento, 1998).

Estos ecosistemas son accionados por la energía del sol, como los ecosistemas naturales, pero difieren de estos en algunos sentidos: existen fuentes de energía auxiliar (combustibles, trabajo animal y humano); la diversidad es reducida en gran medida por el manejo humano con el fin de masificar el rendimiento en la producción de alimento y otros bienes; los animales y plantas dominantes se seleccionan de manera artificial y no natural; y el control es externo y orientado a las metas del ser humano, en vez de interno por retroalimentación de subsistemas como en los ecosistemas naturales (Odum y Sarmiento, 1998).

Es decir que, un agroecosistema es un ecosistema que es constantemente perturbado por la acción del ser humano, la cual lo mantiene en estados iniciales de sucesión, con una biodiversidad muy disminuida, en el cual las especies que se encuentran son escogidas por el ser humano y no las producto del proceso de coevolucion, en donde los flujos de energía son determinados por el ser humano y en los cuales la redundancia trófica es casi inexistente, además este tipo de ecosistema es cíclicamente llevado a un estado de diversidad mínimo (máxima perturbación o catástrofe) al inicio de cada ciclo de cultivo (Figura 1), por lo cual se llevan a cero todas las relaciones entre los elementos del ecosistema.


Figura 1. Inicio del ciclo de siembra. Con el laboreo del suelo se llevan a cero las relaciones tróficas.

Es de resaltar que la preservación de la redundancia (la repetición de funciones), puede ser positiva, ya que esta pudiese promover la recuperación de las alteraciones producidas por las actividades humanas (Odum y Sarmiento, 1998) y es posible que sea el proceso que se encuentre detrás de la homeostasis.

Un ejemplo notable en la diferencia entre integración y redundancia de funciones de las especies dentro de su comunidad, se observa en los casos en que los insectos se convierten en plagas (Odum y Sarmiento, 1998).

La mayoría de las plagas agrícolas son especies que llevan vidas relativamente inocuas en sus hábitats nativos, pero resultan problemáticas cuando invaden un sistema agrícola (Odum y Sarmiento, 1998).

En su hábitat natural, estas especies actúan como partes de ecosistemas bien ordenados, en los cuales los excesos de reproducción y alimentación son controlados, como resultado de largos períodos de ajuste evolutivo (Odum y Sarmiento, 1998).

En situaciones nuevas (e.g., invasión de agroecosistemas), en que se carece de tales controles naturales, las poblaciones se comportan como un cáncer que puede destruir todo el sistema antes de sea posible establecer controles artificiales (Odum y Sarmiento, 1998).

Es decir, que se ha establecido una relación entre la diversidad de un ecosistema y la homeostasis del mismo, esto es un indicativo de que la falta de diversidad pudiese ser la razón de la falta de homeostasis observada en los agroecosistemas.

Estimación de la biodiversidad

Ahora bien, en este marco de ideas, la variable que deberíamos medir para comparar los ecosistemas naturales con los agroecosistemas seria la biodiversidad, sin embargo esto nos pudiese llevar a errores, ya que todas las medidas de biodiversidad con las que actualmente contamos, son producto del enfoque reduccionista de la ciencia establecida, y por lo tanto solo se centran en el estudio de los componentes por separado, y no toman en cuenta sus interacciones, lo cual se puede apreciar en el hecho de que en estos índices básicamente se toman como datos el numero de especies o clases observado (S) y el tamaño de la muestra (N), es decir ninguna variable toma en cuenta las relaciones entre las partes, solamente se toman en cuenta individualmente.

A estos estimados de biodiversidad les hacen falta tomar en cuenta la diversidad de interacciones, es decir, las diferentes relaciones entre los componentes de la comunidad, la cual no es necesariamente proporcional a la obtenida directamente de los índices clásicos de biodiversidad.

Por ejemplo, si en un ecosistema las relaciones tróficas son del tipo lineal (Figura 2), es decir el flujo de energía sigue un solo camino posible, los estimados de biodiversidad obtenidos de los índices clásicos son proporcionales a la diversidad trófica (comparar número de flechas y organismos en la Figura 2), ya que ambos se incrementan monótonamente.


Figura 2. Cadena trófica lineal.

Pero, si en el ecosistema las relaciones no son lineales (Figura 3), es decir, que el flujo de energía puede seguir diferentes rutas, los índices de biodiversidad clásicos siempre subestiman los niveles de diversidad trófica (comparar número de flechas y organismos en la Figura 3).

Figura 3. Cadena trófica no lineal.

Si este es el caso, con el empleo de estos índices, nunca se podría establecer el proceso responsable de la ocurrencia de homeostasis, ya que la misma es una propiedad emergente y como tal depende de las relaciones entre los elementos y no de las características individuales de estos por separado, por lo tanto, con su uso jamás se pudiesen establecer las características de la arquitectura de un agroecosistemas capaces de reproducir la autoregulación de las poblaciones de insectos, que es el fin por ejemplo de un área tan importante en la Agroecología como el manejo ecológico de plagas.

De esta manera se puede apreciar fácilmente que uno de los mayores retos que enfrentamos los agroecólogos es el construir herramientas ad hoc, que nos permitan abordar los problemas inherentes a la producción agrícola de una manera concordante con nuestras bases filosóficas.


Para elaborar un índice de biodiversidad que tome en cuenta las relaciones entre los elementos del ecosistema es indispensable utilizar las herramientas de mecánica estadística de redes complejas.

Una primera aproximación a un índice de diversidad holistico debería tomar en cuenta, como lo hacen los índices tradicionales el tamaño de la muestra (N) y el número de clases presentes en la muestra (S), tal vez relacionando estas medidas con la entropía del sistema como lo hace el índice de Shannon, pero además de esto debería tomar en cuenta el numero de enlaces en la red, el número de compartimientos o modularidad de la trama y la redundancia.

Una buena medida estándar del número de enlaces en la red es la densidad (D), esta es una medida del número de enlaces observado en la red comparados con el máximo posible (grafo completo, donde todos los nodos de la red se conectan con todos los demás), la expresión matematica de la densidad tiene la siguiente forma (Costa y Silva, 2005):

Donde Vo es el número de enlaces observado y Vmax es el número de enlaces en un grafo completo con un número de vértices igual al de la red estudiada. El número de vínculos en un grafo completo con N número de nodos es (Costa y Silva, 2005):

La modularidad de la trama se puede estimar mediante el estudio del mezclado de los elementos de la red, es decir, la tendencia de elementos de diferentes tipos a interactuar. Para esto se debe construir una matriz de mezclado M, compuesta de elementos mst, donde mst representa el número de vínculos que conectan elementos del tipo s con elementos del tipo t, donde los diferentes tipos representan por ejemplo gremios ecológicos.

Esta matriz puede ser normalizada (Costa y Silva, 2005):

Donde M representa la suma de todos los elementos en la matriz M.

La probabilidad de que un elemento s tenga un enlace con un elemento t es (Costa y Silva, 2005):

Nótese que:

P(s,t) y M normalizada pueden ser usados para cuantificar la tendencia de la trama trofíca a conectar nodos del mismo tipo, lo que se conoce como el mezclado (assortativity).

Se puede definir un coeficiente de mezclado como (Costa y Silva, 2005):

Donde T es el número de diferentes tipos (gremios) en la red.

Se puede apreciar que Q toma valores 0≤ Q≤1, donde Q = 1 representa una red no mezclada perfecta (los nodos de un tipo solo se relacionan con los de su mismo tipo) y Q= 0 representa una red completamente mezclada (Costa y Silva, 2005).

Esta última ecuación presenta el problema que cada gremio tiene el mismo peso, sin importar el número de especies en el gremio, una definición alternativa que evita este problema es (Costa y Silva, 2005):


Donde valores de Rc cerca de 0 indican baja modularidad de la red mientras que valores cercanos a 1 indican marcada modularidad.

La redundancia de la red puede ser estimada a través del coeficiente de agrupamiento, esta medida está relaciona con la presencia de bucles dentro de la red, por lo que representa una medida de la redundancia de la trama y de la posible presencia de retroalimentación, por lo cual esta posiblemente relacionada con la homeostasis de la red. Una definición de este índice es(Costa y Silva, 2005):
Donde N∆ es el número de triángulos en la red y N3 es el número de tripletas conectadas. Un triángulo es un set de tres nodos con vínculos entre cada par de nodos, una tripleta conectada es un set de tres nodos donde cada nodo puede ser alcanzado a partir de cualquier otro nodo de la tripleta (directa o indirectamente). En la ecuación anterior el factor 3 en N se explica por que cada triangulo puede ser visto como consistente de tres tripletas. Estas medidas se pueden definir de la siguiente manera (Costa y Silva, 2005):
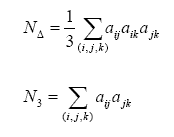
Donde la suma debe hacerse sobre todas las tripletas ordenadas (i,j,k) de los distintos nodos i,j y k.

De esta manera la ecuación del índice de diversidad holistico tentativamente pudiese tomar la forma:


Donde H´ es el valor del índice de Shannon. Esta aproximación toma en cuenta aspectos claves de la biodiversidad de un ecosistema, no solamente los relacionados con la riqueza y abundancia. Sin embargo para su estimación hace falta un conocimiento de las características de la comunidad muy superior al necesario para el cálculo de los índices reduccionistas.

De esta manera nos damos cuenta que en la Agroecología debido al marco conceptual con el cual se trabaja se hace indispensable generar herramientas acordes con la filosofía, tarea que no necesariamente es simple, en la cual se hace necesario el uso de las técnicas propias de la teoría de los sistemas complejos.

Esto sabemos.
Todo esta conectado
como la sangre
que une a una familia…
Lo que le acaece a la tierra,
acaece a los hijos e hijas de la tierra.
El hombre no tejió la trama de la vida;
es una mera hebra de la misma.
Lo que le haga a la trama,
se lo hace a sí mismo.


Ted Perry, 1996.

Bibliografía:

Capra, 1998. La Trama de la Vida: Una Nueva Perspectiva de los Sistemas Vivos. Anagrama.

Costa, L. da F.; Silva, F. N. 2005. Hierarchical characterization of complex networks. Journal of Statistical Physics, v. 125, p. 845-876.

May R M. 1973. Stability and complexity in model ecosystems. Princeton. NJ: Princeton. I. University Press.

Odum, E. P., Sarmiento, F. O. 1998. La Ecología: el puente entre ciencia y sociedad. Editorial. McGraw-Hill Interamericana de México.


.
.
---------------------------------------o----------------------------------
.
The Apple Incident